چکیده
افزایش سطح دریا و فرسایش ساحلی میتواند مناظر غنی از کربن خشکی را زیر آب ببرد، اما سرنوشت اکولوژیکی و اهمیت اقلیمی چنین رسوبات کربن ساحلی باقیمانده عمدتاً ناشناخته باقی مانده است. ما از کشف صخرههای توربی استواری غرقشده در آبهای کمعمق ساحلی مجمعالجزایر بازوتو، موزامبیک گزارش میدهیم؛ میراثی از جنگلهای ساحلی باستانی که اکنون به زیستگاههای دریایی بستر تبدیل شدهاند. تاریخگذاری رادیوکربنی (14C) سنینی بین ~ 300 تا ~ 5000 سال قبل از حال حاضر (BP) را آشکار میکند که نشاندهنده منشأ میانی تا اواخر هولوسن به عنوان باتلاقها و جنگلهای توربی ساحلی است که سپس توسط افزایش سطح دریا زیر آب رفتند. مواد توربی نمونهبرداریشده حاوی تا 40٪ کربن آلی بر اساس وزن خشک است، که نشاندهنده یک بستر توربی ساحلی غنی از مواد آلی باقیمانده است نه یک ذخیره کربن مقیاس زیستگاه یا مساحتی کمّیشده، و مقادیر d12C حدود − 27‰ منشأ عمدتاً گیاهی خشکی کربن را تأیید میکند. صخرههای توربی کمعمقتر هستند و نوسانات بیشتری در خواص فیزیکوشیمیایی، محیطی و فیزیکی نسبت به صخرههای مرجانی سخت اسکلتی مجاور نشان میدهند که بر ساختار بیولوژیکی و عملکرد زیستگاه تأثیر میگذارد. بررسیهای تنوع زیستی در چندین مقیاس (چهارگوشههای بستر، ترانسکتهای بیمهرگان، ماهیان کوچک و مگافونا) نشان داد که این صخرههای توربی غنی از کربن، مجموعهای متنوع و متمایز از حیات دریایی را حمایت میکنند که تفاوت معناداری با صخرههای مرجانی نزدیک دارد. بستر توربی توسط بیمهرگان متحرک و ثابت متنوعی مورد سکونت قرار گرفته که پیچیدگی ساختاری برای جوامع ماهی و به عنوان زیستگاه پرورشگاهی فراهم میکند، با غنایی قابل مقایسه با اکوسیستمهای صخره مرجانی. مهمتر اینکه، جوامع همپوشاننده ارتباط اکولوژیکی بین انواع صخره را برجسته میکنند (41 و 44 گونه ماهی کوچک/مگافونا مشترک)، حتی اگر ترکیب زیستگاه به طور چشمگیری متفاوت باشد. برخلاف صخرههای مرجانی سخت مجاور که توسط مرجانهای سازنده صخره غالب هستند، صخرههای توربی هیچ مرجان زندهای ندارند و در عوض با چمن دریایی، جلبکهای بزرگ و اسفنجهایی مشخص میشوند که از تورب به عنوان بستر استفاده میکنند، سیستمی غنی از کربن و یک شبکه غذایی مبتنی بر دتریتوس ایجاد میکنند. یافتههای ما نشان میدهد که چگونه سیستمهای خشکی باستانی میتوانند دوام بیاورند و توابع اکولوژیکی معاصر را حمایت کنند، و «بازآفرینی» اکولوژیکی مناظر زمین تحت تغییرات سطح دریا را توضیح میدهد. این موضوع تأکید میکند که چگونه خطوط مبنا اکوسیستم مبتنی بر بستر، تنوع زیستی را شکل میدهند و نیازمند گنجاندن چنین اکوسیستمهای باقیمانده در نقشهبرداریهای نوظهور زیستگاه ساحلی، چارچوبهای حفاظتی و ارزیابیهای کربن میراث ساحلی است.
مقدمه
اکوسیستمهای ساحلی غنی از کربن، مانند جنگلهای حرا، مراتع چمن دریایی و باتلاقهای نمکی، نقش حیاتی در جداسازی طولانیمدت کربن ایفا میکنند. این زیستگاههای پوشیده از گیاه، همراه با جنگلهای ساحلی و پوشش گیاهی تپههای شنی، خاکهای آلی ضخیم و رسوبات توربی را انباشته میکنند که ذخایر عظیم کربن را طی هزارهها حبس میکنند. با این حال، توجه بسیار کمتری به آنچه زمانی رخ میدهد که چنین رسوبات توربی غنی از کربن زیر آب میروند و با تغییر سطح دریا به زیستگاه دریایی تبدیل میشوند، شده است. صخرههای توربی نمونهای نوظهور از این گذار زیستگاهی هستند، که در آن تورب باقیمانده از تالابها و جنگلهای ساحلی باستانی اکنون بستر جامدی در محیط دریایی تشکیل میدهند. در سطح جهانی، صخرههای توربی عمدتاً مستندسازی نشده و کمتر مطالعه شدهاند، علیرغم اهمیت بالقوه آنها به عنوان مخازن کربن میراث ساحلی و نقاط داغ تنوع زیستی. تنها تعداد انگشتشماری موارد در ادبیات ذکر شده و اطلاعات کمی درباره وسعت یا اکولوژی این زیستگاههای توربی زیرآبی وجود دارد. این کمبود پژوهش، خلأ واضحی در درک ما از صخرههای توربی به عنوان بسترهای غنی از کربن، میراث کربن ساحلی تعبیهشده در مناظر دریایی، متمایز از اکوسیستمهای متعارف کربن آبی مانند حرا، باتلاقهای نمکی یا مراتع چمن دریایی باقی میگذارد.
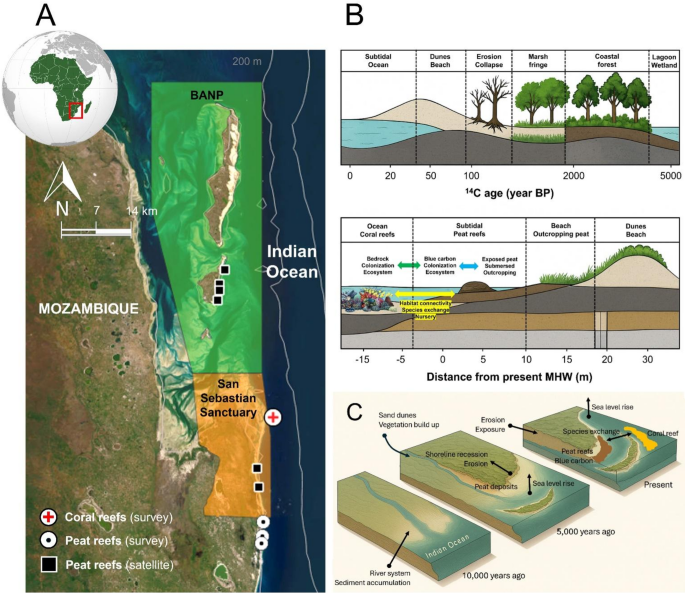
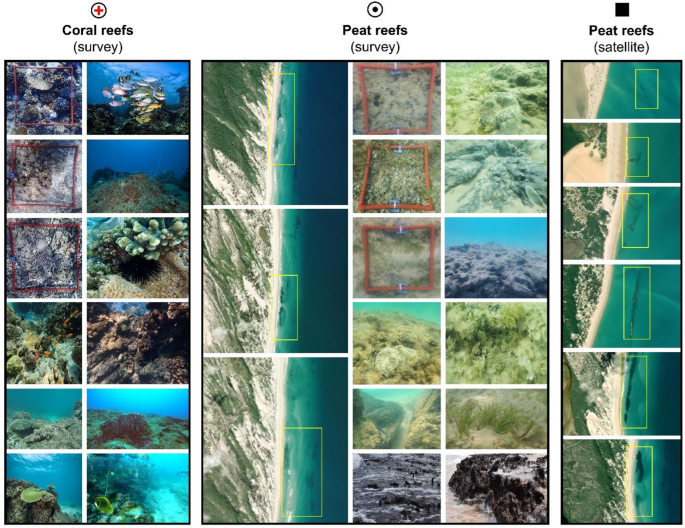
در این زمینه، مجمعالجزایر بازوتو (موزامبیک)، در منطقه اقیانوس هند غربی (WIO)، فرصتی برای مطالعه صخرههای توربی دریایی برای اولین بار در یک محیط استواری فراهم میکند. تا جایی که ما میدانیم، این مجمعالجزایر و خط ساحلی مجاور میزبان نخستین مطالعه موردی هدفمند بر اکولوژی و عملکرد اکوسیستم یک سیستم صخره توربی هستند (شکل 1). بازوتو به دلیل زیستگاههای دریایی متنوع خود، شامل صخرههای مرجانی، حرا، گلولایها، تپههای شنی و بسترهای چمن دریایی شهرت دارد که مجموعاً مجموعهای غنی از حیات دریایی را حمایت میکنند. در این پازل، ما طیف متنوعی از تشکلهای صخره توربی را شناسایی کردیم (شکلهای 1 و 2)، که نمایانگر یک بستر باقیمانده غنی از کربن قبلاً ناشناخته در پازل زیستگاه ساحلی است. بررسی این صخرههای توربی پنجرهای نو به نحوه «بازیافت» رسوبات کربن خشکی مدفون به اکوسیستمهای دریایی کارآمد ارائه میدهد.
صخرههای توربی دریایی محصولات تغییرات طولانیمدت ساحلی و فرسایش هستند. در دورههای افزایش سطح دریا و پیشروی خط ساحلی، باتلاقهای توربی خشکی سابق میتوانند زیر آب بروند و پس از آنکه فعالیت موج رسوبات رویی را حذف کند، لایههای توربی باستانی به عنوان بستر نیمهسخت در کف دریا ظاهر میشوند. قابل ذکر است که پیشرویهای دریایی پس از یخبندان، باتلاقهای توربی ساحلی وسیعی را غرق کردند و «جنگلهای غرقشده» باقیمانده (شکلهای 1 و 2)، رسوبات توربی و کندههای درختی را به جا گذاشتند که اکنون در منطقه بینمد جزر و مد یا زیرآبی قابل مشاهده هستند. آنچه زمانی خاک اشباعشده آب در یک باتلاق ساحلی بود، بنابراین میتواند به یک پلتفرم شبیه صخره در اقیانوس تبدیل شود. این پدیده ظرفیت زمین را برای بازآرایی اکوسیستمها از طریق گذارهای زیستگاهی، تبدیل بسترهای خشکی مدفون به زیستگاههای دریایی جدید در طول زمان ژئولوژیک نشان میدهد. تورب حفظشده در این تشکلها همچنان بسیار آلی باقی میماند، منعکسکننده منشأ آن به عنوان چاه کربن خشکی، اما اکنون در یک کاملاً دریایی وجود دارد.
پس از استقرار زیر آب، صخرههای توربی به طور مؤثر به عنوان پایههای جدید برای حیات دریایی عمل میکنند، مشابه صخرههای سنگی یا مرجانی سنتی. سطوح نامنظم و شکافهای آنها محلهای اتصال و پناهگاه برای موجودات متنوع بستر فراهم میکنند. مشاهدات میدانی در سیستمهای معتدل مستند کردهاند که صخرههای توربی غرقشده به سرعت توسط جلبکهای دریایی، دوکلاهچهها و بیمهرگان مرتبط با صخره مورد سکونت قرار میگیرند. برای مثال، بلوکهای توربی باتلاق نمکی در مصبهای کیپکد یافت شدند که ماتریکس جلبکی فراوان را میزبانی میکردند و خرچنگهای آمریکایی جوان را با چگالیهای قابل مقایسه با زمینهای پرورشگاهی معمولی سنگریزه نگه میداشتند. این بیرونزدگیهای توربی ممکن است صدفها، میگوها و سایر سختپوستان را نیز حمایت کنند که از ساختار توربی برای تغذیه، تولید مثل و پناهگاه استفاده میکنند. با معرفی بستر نسبتاً سخت و ساختاراً پیچیده در جایی که تنها رسوبات نرم (مثلاً شن و گل) قبلاً وجود داشت، صخرههای توربی زیستگاه موجود برای جوامع بستر و ماهیان را گسترش میدهند و پتانسیل تقویت تنوع زیستی محلی و بهرهوری شیلات را دارند.
در محیطهای استواری مانند منظره دریایی مجمعالجزایر بازوتو، نقش اکولوژیکی صخرههای توربی ممکن است به فاونای بزرگتر نیز گسترش یابد. ساختارهای پیچیده صخرهای کشندهماهیان، ماهیان و خزندگان را جذب و حمایت میکنند و با فراهم کردن مکانهای تغذیه، پناهگاه و مناطق پرورشگاهی. صخرههای مرجانی و سنگی موجود مجمعالجزایر، برای مثال، برای حفظ جمعیتهای ماهی و فراهم کردن پناهگاه برای گونههای در معرض خطر مانند لاکپشتهای دریایی، کوسههای صخرهای و دنگونگهایی که این زیستگاهها را مکرراً بازدید میکنند، حیاتی هستند. به قیاس، صخرههای توربی تازه کشفشده احتمالاً خدمات اکوسیستمی قابل مقایسهای ارائه میدهند و به روشی مشابه به عنوان «واحههای» زیرآبی برای حیات دریایی عمل میکنند. با افزایش پیچیدگی ساختاری منظره دریایی، صخرههای توربی ممکن است ارتباطات تروفیکی بین زیستگاههای مجاور (حرا، چمن دریایی، بانکهای شنی و صخرههای مرجانی) را نیز تقویت کنند و اتصالات اضافی در شبکههای غذایی ساحلی ایجاد نمایند. در این مطالعه، ما اصطلاح «بازآفرینی زیستگاه» را توصیفی به کار میبریم نه تحتاللفظی. ظهور تورب خشکی در تنظیمات دریایی میتواند به عنوان نتیجه طبیعی غرق شدن ساحلی، فرسایش و توالی اکولوژیکی درک شود. با این حال، اهمیت اکولوژیکی این فرآیند به شدت به زمینه بستگی دارد. در مناظر دریایی استواری فقیر از بستر سخت، سطوح توربی باقیمانده ممکن است زیستگاه نادر و یکپارچهای در میان دشتهای شنی متحرک دیگر فراهم کنند و فرصتهایی برای کلونیسازی بستر، پناهگاه، استفاده پرورشگاهی و توسعه جوامع مرتبط با صخره ایجاد نمایند. بنابراین سؤال استثنایی این نیست که آیا بسترهای خشکی غرقشده میتوانند مورد سکونت قرار گیرند، بلکه این است که آیا میتوانند توابع اکولوژیکی قابل مقایسه با زیستگاههای صخرهای دریایی تثبیتشده کسب کنند.
در اینجا، ما نخستین ارزیابی اکولوژیکی کمّی چنین صخرههای توربی استواری را ارائه میدهیم و ساختار بستر، جوامع بیمهرگان و ماهیان و حضور مگافونا آنها را با سیستمهای صخره مرجانی مجاور در مجمعالجزایر بازوتو مقایسه میکنیم (شکل 1). ما همچنین رژیمهای فیزیکوشیمیایی، ترکیب/سن مواد توربی و الگوهای مواجهه آنها را برای ارزیابی جایگاه عملکردی آنها در پازل اکوسیستم ساحلی مشخص میکنیم. این صخرههای توربی بقایای ساکن نیستند، بلکه پلتفرمهای پویا-گذار هستند که تحت تأثیر موجهای فصلی، چرخندههای استواری و افراط جزر و مد، مواجهه و دفن اپیزودیک را تجربه میکنند. یافتههای ما پیشنهاد میکند که این زیستگاهها، که زمانی باقیمانده تلقی میشدند، در واقع شرکتکنندگان فعال در بازسازی اکوسیستم تحت افزایش سطح دریا هستند و بستر گذرای جدیدی برای کلونیسازی، تغذیه و استفاده پرورشگاهی توسط گونههای پلاژیک و بنتیک، شامل کوسههای جوان، لاکپشتها و ماهیان مرتبط با صخره ارائه میدهند. با گذشت زمان، چنین تشکلهای توربی ممکن است با فرسایش خط ساحلی و آشکار شدن ذخایر کربن خشکی قبلاً مدفون، بیشتر مرتبط شوند. ما استدلال میکنیم که این فرآیند شکلی از «تولد مجدد» اکوسیستم را تشکیل میدهد، که در آن ظرفیت بازیافت اکولوژیکی زمین از طریق بازآرایی اکولوژیکی بسترهای کربن میراث ساحلی غرقشده محقق میشود. با پل زدن بین فرآیندهای تشکیل تورب خشکی و تابع اکولوژیکی دریایی، این مطالعه دیدگاه جدیدی درباره گذارهای زیستگاهی در اقیانوسی گرمتر و بالاآمده ارائه میدهد. علاوه بر این، بر اهمیت شناخت و محافظت از بسترهای کربن میراث ساحلی غیرمتعارف تأکید میکند که به طور معنادار به تنوع زیستی، حفظ کربن میراث، تشکیل زیستگاه و ارتباطات تروفیکی در سراسر مرز خشکی-دریا کمک میکنند.
زمینه ژئواسپاتیال و ژئومورفولوژیک تشکلهای صخره توربی استواری
توزیع ساختارهای صخره توربی کمعمق در امتداد خط ساحلی مجمعالجزایر بازوتو، موزامبیک، با صخرههای توربی تأییدشده میدانی گذرا و ساختارهای توربی شناساییشده ماهوارهای (شکل 1)، الگوی نامنظم شبیه پازل را آشکار میکند. صخرههای توربی هم در مناطق بینمد جزر و مد و هم زیرآبی مشاهده شدند و به صورت تشکلهای لکهای کشیده در امتداد بخشهای شنی ساحل رخ دادند (شکل 2). بازسازی مفهومی مسیر هولوسنی تحول منظره را پیشنهاد میکند، که در آن مناطق اولیه پوشش گیاهی/جنگل ساحلی و دشتهای غنی از رسوبات به دلیل عقبنشینی خط ساحلی و افزایش سطح دریا به محیطهای توربساز تبدیل شدند. مدل شماتیک (شکل 1C) تکامل سه فاز را ترسیم میکند: تشکیل رسوب و تپه شنی (~ 10,000 سال BP)، غرق شدن جنگل میانه هولوسن و تجمع تورب (~ 5000 سال BP)، و مواجهه و بازکاری مدرن لایههای توربی به زیستگاههای صخرهای ساختاراً پیچیده و غنی از کربن. این تشکلها اکنون به عنوان بسترهای بستر جدید عمل میکنند و پتانسیل گسترش ذخیرهسازی کربن میراث ساحلی و تابعیت زیستگاهی مرتبط از سیستمهای خشکیسو به دامنه دریایی را دارند.
سایتهای صخره مرجانی پیچیدگی ساختاری بالایی معمولی صخرههای حاشیهای را با مجموعههای متنوع مرجان سخت و فاونای مرتبط با صخره نشان میدهند (شکل 2). در مقابل، صخرههای توربی بررسیشده مخلوط ناهمگونی از بسترهای توربی در معرض دید، لکههای سنگی بدون کربنات، جلبکهای بزرگ، چمنهای دریایی و پوشش بیمهرگان بستر را آشکار میکنند. تصاویر چهارگوشه زیرآبی و اورلیهای ماهوارهای تضاد فیزیکی بین انواع صخره را برجسته میکنند، با صخرههای توربی فاقد مرجان سخت زنده اما حمایت از رشد بیولوژیکی متراکم در شکافها و ناهمواریهای سطح. تصاویر ماهوارهای حضور تشکلهای صخره توربی بررسینشده در بخشهای ساحلی اضافی را تأیید میکنند (شکل 2) و توزیع گستردهتر و مرتبط بودن اکولوژیکی این ویژگیها را در مجمعالجزایر بازوتو تقویت میکنند.
دادههای سری زمانی آب دریا
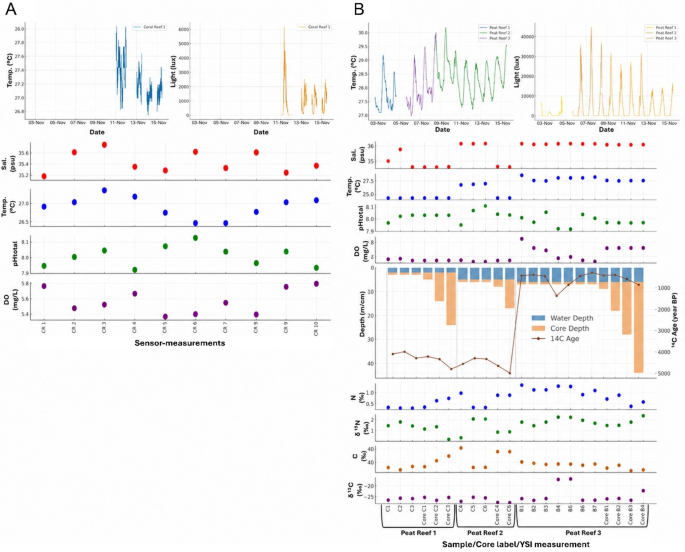
نوسانات کوتاهمدت محیطی بین سایتهای صخره مرجانی سخت و صخره توربی به طور چشمگیری متفاوت بود. در صخره مرجانی (شکل 3A)، اندازهگیریهای با فاصله 15 دقیقهای در طول استقرار 5 روزه دمای آب دریا نسبتاً پایینی بین 26.8 و 27.6 °C را با نوسانات روزانه متوسط نشان داد. شدت نور الگوی چرخهای سازگار با چرخههای روز و شب را با اوج نزدیک به 6,000 lx نمایش داد. در مقابل، صخرههای توربی (شکل 3B) نوسانات گستردهتری در دما و شدت نور در طول استقرار 15 روزه نشان دادند. پروفایلهای دمایی با فاصله 1 دقیقهای در سراسر صخرههای توربی رژیمهای حرارتی پویاتری را با نوسانات روزانه بین 24.5–28.6 °C آشکار کردند. شدت نور در سایتهای بیشترین مواجهه به مقادیری بیش از 40,000 lx رسید، که احتمالاً عمقهای کمتر (2–4 m) و مواجهه بیشتر با نور تابشی در مناطق صخره توربی نسبت به سایت صخره مرجانی عمیقتر (12–22 m) را منعکس میکند.
اندازهگیریهای فیزیکوشیمیایی منفرد
اندازهگیریهای بستر جمعآوریشده در سراسر تمام سایتها تفاوتهایی در شرایط فیزیکوشیمیایی بین صخرههای مرجانی سخت و صخرههای توربی را آشکار کرد (شکل 3). سایت صخره مرجانی پروفایلهای نسبتاً یکنواختی را با شوری حدود 35.3 psu، دمای میانگین 27.0 °C، مقادیر pHtotal بین 7.95 و 8.10 و اکسیژن حلشده (DO) در محدوده 5.4 تا 5.8 mg L−1 نشان داد. در محیطهای صخره توربی، مقادیر شوری متغیرتر از صخرههای مرجانی بود (35–35.8 psu)، در حالی که دماها نیز به طور چشمگیری نوسان داشتند (26.8–30.2 °C). مقادیر pHtotal به طور کلی سازگار بودند (7.9–8.0)، اگرچه کمی کمتر متغیر از سایتهای مرجانی. سطوح DO در صخرههای توربی نوسانات بیشتری را نشان دادند (6–8 mg L−1)، که ممکن است به مواجهه جزر و مدی و دینامیک تجزیه مواد آلی مرتبط باشد.
نمونههای مغزه و تاریخگذاری رادیوکربنی
نمونههای منفرد سطحی، زیرسطحی و مغزه توربی جمعآوریشده در سراسر سه سیستم صخره توربی با استفاده از تحلیل رادیوکربن (¹⁴C) تاریخگذاری شدند (شکل 3B). برچسبهای نمونه اشارهکننده به مواد توربی سطحی در معرض دید، مانند C3، از برچسبهای زیرنمونه مغزه، مانند Core C3، متمایز هستند که به مواد بازیابیشده از داخل یک مغزه توربی عمودی اشاره دارند. جایی که زیرنمونههای مغزه در عمق ترسیم میشوند، مقدار ترسیمشده نقطه میانی یک برش 1 سانتیمتری ضخامت را نشان میدهد. هر سن رادیوکربنی مربوط به یک برچسب نمونه/مغزه فردی است (شکل 3B)، با عمق نمونهبرداری یا مغزه مرتبط که توسط میلههای عمق نارنجی نشان داده شده است. بنابراین این سنین محدودیتهای سن نقطهای از مواد توربی بازیابیشده را نشان میدهند، نه پروفایلهای پیوسته سن-عمق. سنین کالیبرهشده از حدود 800 تا بیش از 4,500 سال قبل از حال حاضر متغیر بودند و حفظ طولانیمدت رسوبات توربی در منطقه دریایی کمعمق/زیرآبی را تأیید کردند. سنین متضاد بین نمونهها از همان صخره توربی نشان میدهد که مواد توربی در معرض دید و مدفون میتوانند از فازهای تجمع مختلف یا سطوح فرسایشی درون کمپلکس توربی مشتق شوند.
امضاهای ژئوشیمیایی و ایزوتوپ پایدار
نمونههای توربی سطحی و زیرنمونههای توربی مغزه امضاهای ژئوشیمیایی متمایزی را سازگار با مواد توربی یکپارچه غنی از آلی نشان دادند (شکل 3B). این مقادیر به مواد توربی نمونهبرداریشده بیانشده به عنوان درصد وزن خشک اشاره دارند و نباید به عنوان محتوای کربن آلی رسوبی مقیاس زیستگاه یا ذخیره کربن مساحتی تفسیر شوند. محتوای کربن بالا و متغیر بود و در برخی نمونههای صخره توربی به بین 20 و 40٪ رسید، در حالی که محتوای نیتروژن به طور کلی از ~ 0.3٪ تا ~ 1.3٪ متغیر بود. نسبتهای ایزوتوپ پایدار d¹³C در مواد توربی به شدت منفی بودند، با بسیاری از نمونهها خوشهای حول − 25‰ تا −28‰، سازگار با منبع مواد آلی غالباً مشتق از گیاهان C3 خشکی. با این حال، برخی نمونهها مقادیر d¹³C کمتر منفی حدود − 16‰ تا −18‰ را نشان دادند که ناهمگونی محلی و اختلاط احتمالی با مواد مشتق از دریایی یا تحت تأثیر کربنات را نشان میدهد. مقادیر d¹⁵N از حدود 0.5‰ تا 2.4‰ متغیر بودند که غنیسازی نیتروژن دریایی نسبتاً پایین را پیشنهاد میکند و تفسیر اینکه مواد توربی نمونهبرداریشده میراث پوشش گیاهی ساحلی را منعکس میکنند، حمایت میکند.
ترکیب زیستگاه/بستر
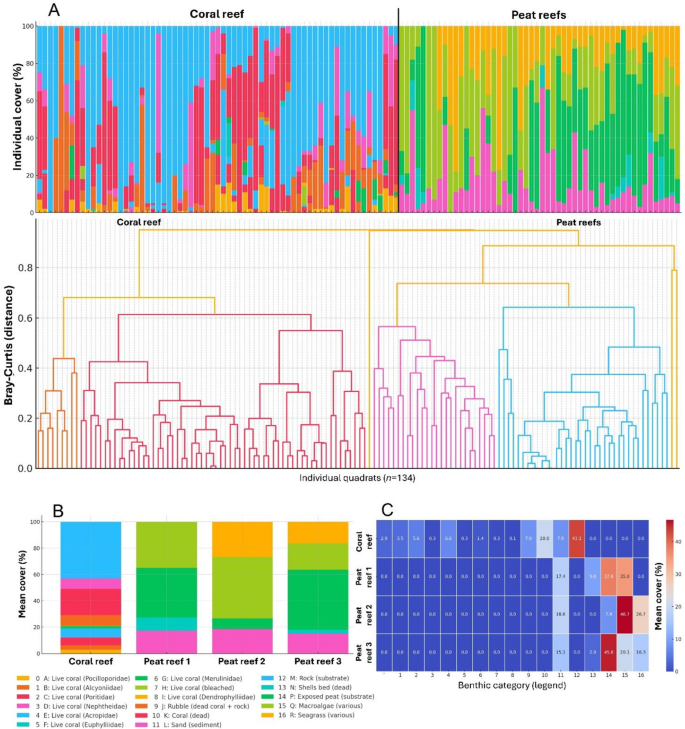
بررسیهای چهارگوشه بستر تفاوتهای ترکیبی واضحی بین زیستگاههای صخره مرجانی و توربی را آشکار کرد. چهارگوشههای فردی (n = 134) پوشش مرجان زنده بالایی (عمدتاً Poritidae، Acroporidae و Pocilloporidae) را در سایتهای صخره مرجانی نشان دادند، در حالی که صخرههای توربی توسط جلبکهای بزرگ، چمنهای دریایی و بستر توربی در معرض دید غالب بودند (شکل 4A). نمودارهای میلهای انباشته یکنواختی ترکیب بستر درون انواع صخره و ناهمگونی بین آنها را برجسته کردند. دادههای پوشش میانگین تجمیعشده توسط سایت (شکل 4B) تأیید کردند که صخرههای مرجانی پوشش مرجان زنده به طور معنادار بالاتری داشتند (~60–70%)، در حالی که صخرههای توربی فراوانی بیشتر جلبکهای بزرگ (~25–30%)، چمن دریایی (~20%) و بسترهای ساختاراً متمایز مانند تورب در معرض دید، صدفهای مرده و ساختارهای بدون کربنات را نشان دادند. مرجان سخت یا نرم زنده در سایتهای توربی کاملاً غایب بود (0%). بصریسازی نقشه حرارتی (شکل 4C) عناصر غالب تشکیلدهنده زیستگاه را توسط نوع صخره تأکید کرد. صخرههای مرجانی سلطه مرجان زنده قوی (تا 41.1%) را نشان دادند، در حالی که صخرههای توربی پوشش میانگین بالای جلبکهای بزرگ (تا 27.6%)، چمن دریایی (20.2%) و بستر توربی (29.4%) را نشان دادند. تحلیل خوشهای مبتنی بر فواصل Bray-Curtis چهارگوشهها را به شدت توسط زیستگاه گروهبندی کرد (شکل 4A)، که سازگاری درونزیستگاهی و ناسازگاری بینزیستگاهی را نشان میدهد. تحلیل مختصات اصلی (PCoA; فاصله Bray-Curtis) جدایی متمایز بین مجموعههای بستر صخره مرجانی و توربی را آشکار کرد (شکل S2). ANOSIM این جدایی را تأیید کرد (R = 0.531، p = 0.001) و PERMANOVA نشان داد که ~30.6٪ از واریاسیون در ترکیب بستر توسط نوع زیستگاه توضیح داده شد (R² = 0.306، p = 0.001). تحلیل SIMPER دستههای بستر مشارکتکننده بیشترین در ناسازگاری را شناسایی کرد: بستر توربی در معرض دید، جلبکهای بزرگ و چمن دریایی در صخرههای توربی غالب بودند، در حالی که دستههای مرجان زنده (Merulinidae، Poritidae، Acroporidae) اکثر ساختار صخره مرجانی را تشکیل میدادند (شکل S3).
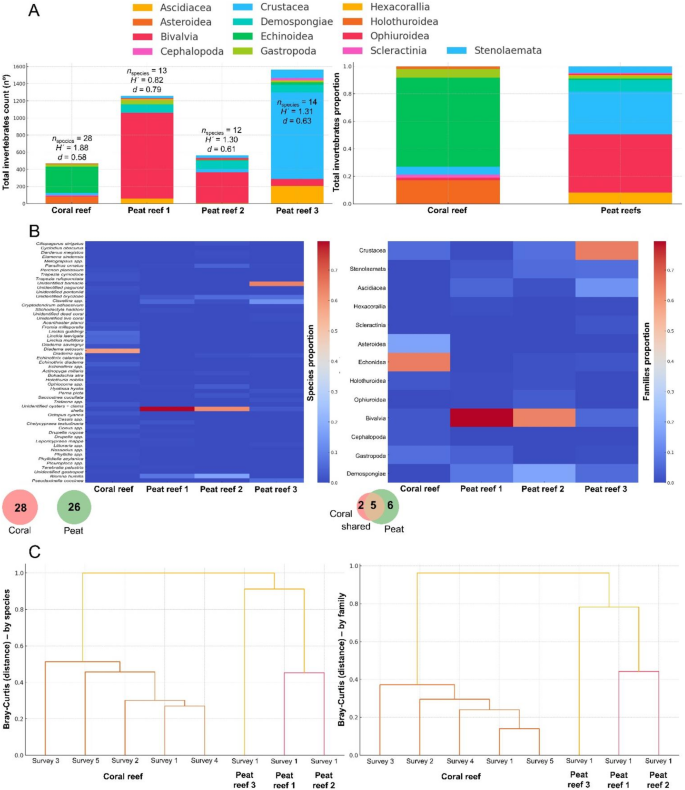
ساختار جامعه بیمهرگان
شمارش بیمهرگان تفاوتهای قوی در فراوانی و ترکیب تاکسونومیک بین زیستگاهها را آشکار کرد (شکل 5A). صخرههای توربی شمارش کل بیمهرگان بالاتری نسبت به صخره مرجانی حمایت کردند. بررسیهای صخره مرجانی 28 گونه را ثبت کردند، در حالی که صخرههای توربی فردی 12–14 گونه را میزبانی میکردند. شاخصهای تنوع (Shannon H' و شاخص سلطه d) مجموعههای متعادلتری را در صخره مرجانی (H' = 1.88، d = 0.58) در مقایسه با صخرههای توربی (H' = 0.82–1.31، d = 0.61–0.79) نشان دادند، که در آنها سلطه بالاتر بود. نمودارهای میلهای انباشته نشان دادند که مجموعههای صخره مرجانی تعادل تاکسونومیک بیشتری داشتند، در حالی که صخرههای توربی توسط خارتنگان، دوکلاهچهها و سختپوستان شبیه سرخپوست غالب بودند. صخرههای توربی فاقد خزندگان کیسهای و اسفنجها بودند و تاکسا خاص صخره مرجانی (مثلاً اسفنجهای معمولی، آسکیدیاسه) در سایتهای توربی ثبت نشدند. نقشههای حرارتی نسبتهای گونه و خانواده (شکل 5B) پروفایلهای جامعه متمایز را تأیید کردند. صخرههای مرجانی چندین خانواده منحصربهفرد را میزبانی میکردند که در صخرههای توربی مشاهده نشد، در حالی که صخرههای توربی توسط تاکساهای کمتر اما فراوانتر غالب بودند. نمودارهای ون هیچ همپوشانی گونهای بین زیستگاهها را نشان ندادند؛ تنها 5 از 13 خانواده کل مشترک بودند. تحلیل SIMPER نشان داد که گونههای ناشناس صدف خوراکی و سرخپوست، همراه با Biemna humilis و Clavelina spp., بیشترین مشارکت را در تفاوتهای جامعه داشتند (شکل S3). اینها به ویژه در صخرههای توربی غالب بودند. درختنمودارهای مبتنی بر ناسازگاری Bray-Curtis جدایی واضح توسط زیستگاه را در هر دو سطح گونه و خانواده آشکار کردند (شکل 5C). نمودارهای PCoA جدایی گروهی متوسط را نشان دادند، (شکل S2) حمایتشده توسط نتایج ANOSIM: R = 0.124 (p = 0.013) در سطح گونه و R = 0.144 (p = 0.022) در سطح خانواده. PERMANOVA نشان داد که نوع صخره 52.6٪ از واریاسیون سطح گونه و 55.5٪ از واریاسیون سطح خانواده در ساختار مجموعه را توضیح داد (p < 0.05 در هر دو مورد).
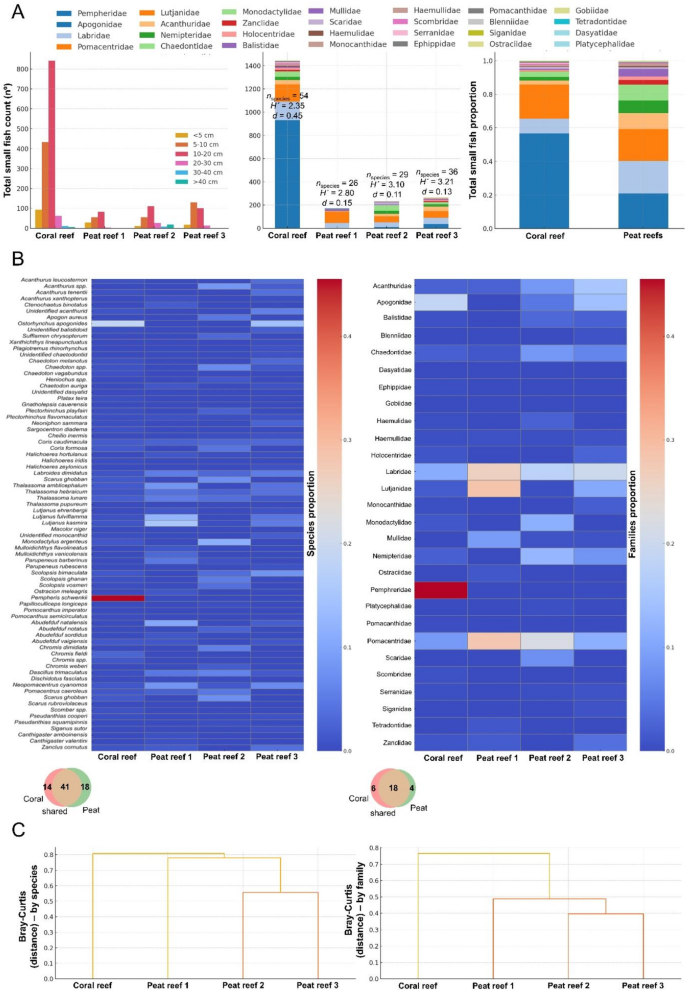
ساختار جامعه ماهیان کوچک
صخرههای مرجانی فراوانی ماهیان کوچک (ماهی < 20 cm طول کل) به طور چشمگیری بالاتری نسبت به صخرههای توربی داشتند (شکل 6A)، به ویژه در کلاسهای اندازه < 5 cm و 5–10 cm. سایتهای مرجانی 54 گونه ثبتشده داشتند (H' = 2.35)، با سلطه متوسط (d = 0.45). تنوع صخره توربی کمی بالاتر بود (26–36 گونه؛ H' = 2.80–3.21)، اما فراوانی فردی کمتر بود و جوامع به طور تاکسونومیک به سمت چند خانواده غالب متمایل بودند. ترکیب سطح خانواده بین زیستگاهها متفاوت بود (شکل 6A). صخرههای مرجانی توسط Pomacentridae، Labridae و Chaetodontidae غالب بودند، در حالی که صخرههای توربی نسبتهای بالاتری Nemipteridae، Lethrinidae و Sciaenidae را میزبانی میکردند. نمودارهای ون (شکل 6B) همپوشانی تاکسونومیک گسترده را نشان دادند: 41 گونه و 18 خانواده مشترک بودند، با صخرههای توربی میزبان 18 گونه انحصاری در مقایسه با 14 گونه در صخرههای مرجانی. نقشههای حرارتی نشان دادند که تفاوتهای کلیدی در فراوانی نسبی به خانوادههای خاصی مرتبط بودند، مانند سلطه بالاتر Pomacentridae در صخرههای مرجانی و پراکندگی گستردهتر خانوادهها در سیستمهای صخره توربی (شکل 6B). خوشهبندی سلسلهمراتبی بررسیهای صخره مرجانی را به وضوح از بررسیهای صخره توربی جدا کرد (شکل 6C)، اما همپوشانی بیشتر از بیمهرگان یا پوشش بستر بود. تحلیل SIMPER Ostorhynchus apogonides و Pempheris schwenkii را به عنوان مشارکتکنندگان کلیدی در ناسازگاری مرجانی-توربی شناسایی کرد (شکل S3). این دو گونه به تنهایی بیش از 60٪ از فاصله Bray-Curtis را تشکیل میدادند. آزمونهای چندمتغیره جدایی متوسط اما غیرمعنادار بین زیستگاهها را نشان دادند. نتایج PCoA خوشهبندی ضعیف توسط نوع صخره را پیشنهاد کردند. ANOSIM R = 0.50 برای هر دو مقایسه سطح گونه و خانواده بازگرداند (p > 0.25)، و PERMANOVA قدرت توضیحی پایین را نشان داد (R² = 0.126–0.450، p > 0.25).
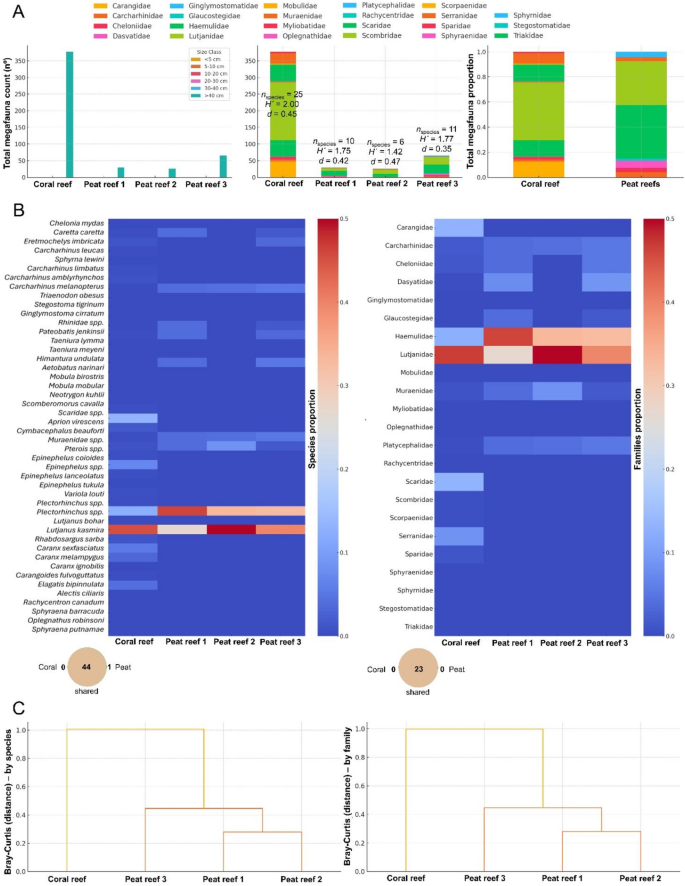
ساختار جامعه مگافونا
شمارشهای مگافونا (حیوانات > 20 cm طول کل) در سایت مرجع صخره مرجانی بیشترین بودند، با مشاهدات کل به طور قابل توجهی پایینتر در سراسر تمام سایتهای صخره توربی (شکل 7A). بررسیهای صخره مرجانی 25 گونه را ثبت کردند، در حالی که سایتهای صخره توربی 6–11 گونه را ثبت کردند. تنوع Shannon در صخره مرجانی بیشترین بود (H´ = 2.00) و به تدریج در سراسر صخرههای توربی پایینتر شد (H´ = 1.42–1.77)، در حالی که شاخصهای سلطه (Berger-Parker d) در صخرههای توربی بالا بودند و مشارکت قوی از چند تاکسای فراوان را منعکس میکردند. ترکیب جامعه تغییرات واضحی بین انواع صخره نشان داد. نقشههای حرارتی غنای گونهای بالاتر و تعادل بیشتر در سایت صخره مرجانی را نشان دادند، با Lutjanus kasmira غالب در مجموعههای صخره توربی (شکل 7B). نمودارهای ون هیچ گونه یا خانواده انحصاری مرجانی را نشان ندادند و درجه بالایی از همپوشانی (44 گونه مشترک؛ 23 خانواده مشترک) را نشان دادند که ارتباط اکولوژیکی در مقیاس گسترده را پیشنهاد میکند. خوشهبندی سلسلهمراتبی (ناسازگاری Bray-Curtis) گروهبندیهای سایت متمایز توسط نوع صخره را نشان داد، با نمونههای صخره مرجانی تشکیل یک خوشه جداگانه از سایتهای صخره توربی (شکل 7C). با این حال، نتایج PERMANOVA و ANOSIM از نظر آماری معنادار نبودند (p > 0.05)، علیرغم مقادیر R بالا (R = 1.000)، که پیشنهاد میکند جدایی مشاهدهشده ممکن است منعکسکننده نمونهبرداری محدود یا واریاسیون درونگروهی باشد نه واگرایی ساختاری سازگار. تحلیل SIMPER گونههای ممیز کلیدی را شناسایی کرد، با L. kasmira و Scaridae spp. بیشترین مشارکت را در ناسازگاری داشتند.
تمایز عملکردی زیستگاه
تحلیلهای مقایسهای ما تفاوتهای ساختاری و عملکردی واضحی بین صخرههای مرجانی محلی و زیستگاههای صخره توربی استواری تازه توصیفشده را نشان میدهند. بررسیهای چهارگوشه بستر تأیید کردند که صخره مرجانی بررسیشده در مجمعالجزایر بازوتو توسط چارچوب مرجان اسکلتی غالب است، در حالی که صخرههای توربی از بستر توربی باقیمانده یکپارچه مرتبط با جلبکهای بزرگ، لکههای چمن دریایی و پوشش مرجان سخت زنده به طور چشمگیری پایینتر یا غایب تشکیل شدهاند. این تضاد بسترهای بنیادی متمایز را منعکس میکند: صخرههای مرجانی توسط کربنات کلسیم زیستی ساخته میشوند، در حالی که صخرههای توربی بستر آلی غنی از کربن، موروثی ژئولوژیک مشتق از رسوبات توربی ساحلی باستانی را فراهم میکنند. این ساختارهای فیزیکی متفاوت احتمالاً تفاوتها در دسترسی منابع و میکروزیستگاهها را هدایت میکنند و منجر به مجموعههای جامعه واگرا بین دو نوع زیستگاه میشوند.
جوامع بیمهرگان متمایزترین تمایز بین زیستگاههای صخره مرجانی و توربی را نشان دادند. بیمهرگان بستر، شامل خارتنگان، سختپوستان و نرمتنان، تفاوتهای آماری معناداری در فراوانی و ترکیب مرتبط با نوع زیستگاه نشان دادند. تحلیلهای چندمتغیره این را حمایت میکنند: آزمونهای PERMANOVA و ANOSIM بر مجموعههای بیمهرگان اثر زیستگاه معناداری را آشکار کردند (p < 0.01)، و ترتیبدهی PCoA خوشهبندی متمایز نمونههای بیمهرگان صخره مرجانی در مقابل صخره توربی را نشان داد. برای مثال، مرجانها و همراهان الزامی آنها (مثلاً دهپایان ساکن در مرجان و گاستروپودهای مرجانخوار الزامی) در صخرههای مرجانی سخت بسیار بیشتر رایج بودند، در حالی که صخرههای توربی دتریتوسخواران و چراکندههای جلبکی بیشتری را سازگار با بسترهای غنی آلی و جلبکی حمایت میکردند. این یافتهها پیشنهاد میکنند که ارگانیسمهای ثابت و متصل به سایت به شدت به ساختار زیستگاه زیربنایی و فلور بستر پاسخ میدهند. در مقابل، مجموعههای ماهیان کوچک صخرهای و مگافونای متحرک بین دو زیستگاه متغیرتر بودند، با هیچ جدایی قطعیتی در فضای چندمتغیره (PERMANOVA p > 0.05). بررسیهای ماهیان کوچک استخرهای گونهای همپوشاننده گستردهای را نشان دادند، و فاونای بزرگ متحرک (مثلاً کوسهها، سفرهماهیان، لاکپشتها) در حال استفاده از هر دو نوع زیستگاه مشاهده شدند. تمایز ضعیفتر در این گروهها تحرک و رفتار تغذیه فرصتطلبانه آنها را منعکس میکند، بسیاری از ماهیان و مگافونا در سراسر لکههای زیستگاه برای جستجوی غذا یا پناهگاه حرکت میکنند و ناسازگاری جامعه بین صخرههای مرجانی و توربی را کاهش میدهند. نتایج ما تمایز عملکردی زیستگاه قوی در سطح بستر و جوامع ثابت را نشان میدهد، در مقابل یکپارچگی بیشتر فاونای بسیار متحرک در سراسر منظره دریایی.
صخرههای توربی به عنوان پناهگاههای عملکردی و گسترشها
علیرغم تفاوتهای ساختاری، صخرههای توربی استواری به عنوان گسترشهای عملکردی مهم اکوسیستم صخره مرجانی ظاهر میشوند. همپوشانی گونهای قابل توجه بود؛ ما حداقل 41 گونه ماهی کوچک صخرهای مشترک بین زیستگاههای مرجانی و توربی، و همچنین 44 گونه مگافونا مشترک را ثبت کردیم که نشان میدهد بسیاری از ارگانیسمهای مرتبط با صخره به راحتی مناطق صخره توربی را استفاده میکنند. صخرههای توربی به جای ناهنجاریهای منزوی، به عنوان زیستگاههای مکمل عمل میکنند که دامنه اکولوژیکی کل سیستم صخره را با تقویت ارتباط بین لکهها گسترش میدهند. قابل توجه است که ما ماهیان جوان متعددی را در صخرههای توربی encounter کردیم، شامل جوانان گونههایی معمولاً مرتبط با صخرههای مرجانی (مثلاً lutjanids، haemulids، pomacentrids). این پیشنهاد عملکرد پرورشگاهی مشابه بسترهای چمن دریایی یا حرا را میکند، که در آن مناطق صخره توربی ساختاراً پیچیده پناهگاه و فرصتهای تغذیه برای مراحل اولیه زندگی ماهیان صخرهای فراهم میکنند. اتصالات چرخه زندگی بینزیستگاهی مشابه در مناظر دریایی استواری خوب مستند شدهاند، بسیاری از ماهیان صخرهای در پرورشگاههای پوشیده از گیاه یا جلبکی استخدام میشوند و بعداً به زیستگاههای صخره بالغ مهاجرت میکنند. در مطالعه ما، صخرههای توربی لکههای چمن دریایی درون پازل توربی را شامل میشدند که احتمالاً غذا برای گیاهخواران و پناهگاه از شکارچیان ارائه میدهند. مگافونای گیاهخوار مانند لاکپشتهای سبز (Chelonia mydas) و دنگونگها (Dugong dugon)، هر دو موجود در منطقه بازوتو و گاهی اوقات اطراف مناطق توربی مشاهده میشوند، نیز ممکن است از زیستگاههای توربی برای تغذیه بر لکههای چمن دریایی استفاده کنند. وقوع این چراکندههای نمادین نقش صخرههای توربی را به عنوان مکانهای تغذیه قابلاجرا که فراتر از محدودیتهای مناطق مرجانی کف سخت میروند، تأکید میکند.
صخرههای توربی استواری همچنین به نظر میرسد به عنوان زیستگاههای پناهگاه برای برخی تاکسا عمل میکنند. ما فراوانی بالای خرچنگهای خاردار (Panulirus spp.) و سایر بیمهرگان پنهان در حال پناه گرفتن در شکافهای بلوکهای توربی یکپارچه را یادداشت کردیم. این تشکلهای توربی ساختارهای سهبعدی پیچیدهای ایجاد میکنند، شامل لبههای زیربریده و حفرهها، مشابه شکافهای سنگی یا مرجانی. چنین ویژگیهایی احتمالاً فاونای کوچک را از شکارچیان و شرایط سخت محیطی محافظت میکنند و خدماتی مانند آنهایی که توسط صخرههای سنگی یا زیستگاههای ریشه حرا ارائه میشوند، فراهم میکنند. در واقع، مطالعات عرض جغرافیایی معتدل نشان دادهاند که صخرههای توربی (تشکیلشده از تورب باتلاق نمکی فرسایشیافته) میتوانند به عنوان زیستگاه پرورشگاهی و پناهگاه حیاتی برای خرچنگها و ماهیان جوان عمل کنند. یافتههای ما مکانیسم قابل مقایسهای را در استوا پیشنهاد میکنند: صخره توربی پناهگاه فیزیکی و زیستگاه تغذیهای برای گونههایی فراهم میکند که همچنین صخرههای مرجانی نزدیک را بهرهبرداری میکنند. در اصل، صخرههای توربی ردپای عملکردی اکوسیستم صخره را بزرگتر میکنند و پازلی از لکههای زیستگاهی متقابل ایجاد میکنند. این ناهمگونی زیستگاهی مقیاس دقیق احتمالاً همپوشانی گونهای بالایی که مشاهده کردیم را پشتیبانی میکند، زیرا ارگانیسمها بین لکهها برای بهرهبرداری از منابع مختلف حرکت میکنند.
رژیمهای مواجهه فیزیکی نیز مکانیزم ساختاری کلیدی هستند. بسیاری از سایتهای صخره توربی در مطالعه ما کمعمق بودند (عمق 0–5 m) و ممکن است تحت مواجهه جزر و مدی، خشک شدن فصلی و وجود گذرا باشند. فلتهای صخره توربی بینمد جزر و مد، برای مثال، مواجهه هوایی دورهای و شرایط دما/نور بالا در جزر را تجربه میکنند که few live corals can tolerate. در عوض، جلبکهای بزرگ مقاوم، چمنهای دریایی و بیمهرگان سازگار با شرایط متغیر در آنجا شکوفا میشوند و در مد بالا تغذیه مصرفکنندگان متحرک را فراهم میکنند. در صخرههای توربی زیرآبی (بخشهای عمیقتر غیرمواجهه با جزر و مد)، شرایط پایدارتر هستند، اما حتی این مناطق تحت تأثیر تغییرات فصلی (مثلاً کدورت موسمی یا طوفان) قرار دارند. این یافتهها با مفهوم اینکه مناظر دریایی پازلشامل چندین زیستگاه میتوانند تنوع بیشتری را حمایت کنند و نقشهای اکوسیستمی مکمل ایفا نمایند، همراستا هستند. صخرههای توربی، اگرچه غیرمتعارف در منشأ، در این مفهوم منظره دریایی به عنوان نوع دیگری از زیستگاه که گونههای مرتبط با صخره یاد گرفتهاند بهرهبرداری کنند، جای میگیرند.
ارتباط، دینامیک لکهای و تابآوری اکوسیستم
ماهیت پویای زیستگاههای صخره توربی فرآیندهای ارتباط و دینامیک لکهای را برجسته میکند که ممکن است تابآوری اکوسیستم را افزایش دهند. برخلاف چارچوبهای صخره مرجانی سخت نسبتاً ساکن که در جای خود انباشته میشوند، رسوبات توربی باقیمانده هستند و تحت فرسایش و بازتوزیع مداوم قرار میگیرند زیرا وجودشان گذرا در منشأ است. ما شواهد گردش زیستگاه را مشاهده کردیم: بخشهایی از صخره توربی به طور فعال در لبههای رو به دریا فرسایش میکردند و بلوکهای توربی را میشکستند که میتوانند توسط موجها و جریانها حمل شوند. این فرآیند فضای باز برای کلونیسازی جدید ایجاد میکند و پتانسیل بازتوزیع قطعات توربی که ممکن است بستر سخت اضافی محلی فراهم کنند را دارد. چنین چرخههای اختلال و تجدید شبیه دینامیک لکهای در سایر اکوسیستمها مانند جنگلهای بارانی و صخرههای مرجانی است، که در آن اختلال فیزیکی دورهای از رکود جلوگیری میکند و ناهمگونی در سطح منظره را ترویج میکند. در زمینه صخره توربی، سایش توسط طوفانهای فصلی میتواند باعث مرگومیر موضعی ارگانیسمهای ثابت، شامل شکستن و/یا جابهجایی بخشهای ضعیف توربی شود. با این حال، این اختلالات به طور مؤثر بخشهایی از زیستگاه را «ریست» میکنند و اجازه کلونیسازی مجدد توسط جلبکهای سریعرشد، چمن دریایی و بیمهرگان بستر را پس از بهبود شرایط میدهند. ما فرض میکنیم که این چرخه پاکسازی و رشد مجدد متناوب گردش بالا نیچها را حفظ میکند و پتانسیل حمایت از بتا-تنوع بالاتر و جلوگیری از انحصار کامل فضا توسط یک گروه عملکردی واحد، مانند یک تاکسای مرجانی یا جلبکی واحد را دارد. نتیجه جامعهای مخلوطتر و احتمالاً تابآورتر است، زیرا منابع و زیستتوده در سراسر طیف متنوعی از ارگانیسمها با آسیبپذیریهای مختلف توزیع میشوند. این مکانیسم مفهوماً با فرضیه اختلال میانی همراستا است، که در آن سطوح متوسط اختلال تنوع و ثبات اکوسیستم بالاتری را ترویج میکند. در حالی که پوشش مرجان سخت زنده در صخرههای توربی غایب است، جامعه بیوتیک آنها ممکن است تحمل بیشتری نسبت به نوسانات محیطی داشته باشد، ویژگیای که ممکن است با تشدید رژیمهای اختلال در سواحل استواری تحت تغییر اقلیم ارزشمندتر شود.
مهمتر اینکه، صخرههای توربی استواری نشان میدهند که چگونه رسوبات توربی خشکی باستانی میتوانند در پاسخ به افزایش سطح دریا به چارچوب اکولوژیکی دریایی بازآرایی شوند. تورب زیربنایی این صخرهها باقیمانده جنگل ساحلی قدیمی، تالاب یا جنگل حرا است که اکنون غرق شده و به نوع جدیدی از بستر صخره تبدیل شده است. در طول پیشرویهای سطح دریا هولوسن، مناطق وسیعی از تورب ساحلی در سراسر جهان غرق و توسط دریا بازکاری شدند. در مجمعالجزایر بازوتو و خطوط ساحلی مجاور، افزایش مداوم سطح دریا و فرسایش ساحلی همچنان لایههای توربی مدفون را آشکار میکنند و اساساً آنها را به عنوان زیستگاه ساختاری به محیط دریایی جذب میکنند. این شکلی از «تولد مجدد اکوسیستم» را نشان میدهد: پایه آلی یک باتلاق توربی دور از دسترس زندگی دوم را به عنوان ستون فقرات جامعه صخره دریایی پیدا میکند. ما این اصطلاح را برای توصیف بازآرایی اکولوژیکی به کار میبریم نه ایجاد اکوسیستم کاملاً جدید از مواد بیجان. چنین گذارهایی از اکوسیستمهای خشکی به دریایی تابآوری سیستمهای ساحلی، ظرفیت بازآرایی و حفظ تابع اکولوژیکی در مواجهه با تغییر محیطی را تأکید میکنند. مفهوم مشابه «جنگلهای پلیستوسن» غرقشده یا بسترهای توربی است که در سایر مناطق مستند شده و بعداً توسط حیات دریایی مورد سکونت قرار گرفتهاند (مثلاً تورب حرا غرقشده در کارائیب حمایت از جوامع چمن دریایی و جلبکی).
به جای دیدن تورب در معرض دید فقط به عنوان شواهد فرسایش ساحلی، مطالعه ما نشان میدهد که این رسوبات باقیمانده نیز میتوانند زیستگاه ساختاری برای جوامع دریایی فراهم کنند. ارتباط بین صخرههای توربی و زیستگاههای مجاور مرکزی این فرآیند است: شارژهای جزر و مدی و فاونای متحرک انرژی، مواد مغذی و پروپاگولها را بین صخرههای توربی، صخرههای مرجانی و بسترهای چمن دریایی منتقل میکنند و تابآوری کل منظره ساحلی را افزایش میدهند. اگر یک نوع زیستگاه تخریب شود، برای مثال توسط سفیدشدگی مرجان یا آسیب طوفان، وجود پناهگاههای جایگزین مانند صخرههای توربی میتواند به حفظ جمعیت برخی گونههای غیرمرجانی در فاصله کمک کند و بنابراین به ثبات و تابآوری اکوسیستم گستردهتر کمک کند. یافتههای ما بنابراین تأکید میکنند که ارتباط زیستگاهی و دسترسی به زیستگاههای «پشتیبان» اجزای حیاتی تابآوری در اکوسیستمهای ساحلی استواری هستند.
پیامدهای گستردهتر: کربن میراث ساحلی، تابآوری ساحلی و زیستگاههای نادیدهگرفتهشده
صخرههای توربی استواری جنبهای هنوز ناشناخته از سیستمهای ساحلی مرتبط با کربن را برجسته میکنند. رسوبات توربی ساحلی از غنیترین ذخایر کربن سیاره هستند، باتلاقهای توربی استواری میتوانند بیش از 1,000–2,000 Mg C در هکتار زیر زمین انباشته کنند. وقتی چنین رسوبات توربی غرق میشوند و در حوزه دریایی باقی میمانند، میتوانند به حفظ مقادیر قابل توجه کربن آلی در طولانیمدت ادامه دهند، مشروط بر اینکه تورب اشباعشده از آب باقی بماند و فقط به آرامی تجزیه شود. در منطقه مطالعه ما، سنین رادیوکربنی و محتوای کربن آلی بالا در مواد توربی نمونهبرداریشده حفظ طولانیمدت تورب باقیمانده یکپارچه در منطقه دریایی کمعمق/زیرآبی را نشان میدهند. با این حال، حضور جوامع زندگی بر این بستر به تنهایی جداسازی کربن معاصر توسط سیستم صخره توربی را نشان نمیدهد. بنابراین ما این زیستگاهها را به عنوان اکوسیستمهای کربن آبی متعارف معادل حرا، باتلاقهای نمکی یا مراتع چمن دریایی تفسیر نمیکنیم. در عوض، ما آنها را بسترهای توربی باقیمانده غنی از کربن تعبیهشده در پازل زیستگاه ساحلی گستردهتر تفسیر میکنیم. نقش فعلی آنها در چرخه کربن، شامل هرگونه مشارکت از چمن دریایی، جلبکهای بزرگ یا جوامع بستر مرتبط، حلنشده باقی میماند و نیازمند اندازهگیریهای اختصاصی ضخامت تورب، چگالی توده، ذخایر کربن مساحتی، نرخهای دفن یا فرسایش و شارهای گاز گلخانهای است.
وجود صخرههای توربی استواری تابآوری و پتانسیل بازآرایی تطبیقی («بازآفرینی») اکوسیستمهای ساحلی تحت فشار از افزایش سطح دریا و تغییر خط ساحلی را تأکید میکند. ما این مفهوم را توصیفی به کار میبریم نه برای پیشنهاد اینکه مواجهه و کلونیسازی تورب غیرمنتظره در معنای مکانیکی دقیق است. در واقع، گذار تورب خشکی به تنظیم دریایی میتواند به عنوان نتیجه طبیعی غرق شدن ساحلی، فرسایش و توالی اکولوژیکی درک شود. آنچه در مجمعالجزایر بازوتو استثنایی است نتیجه اکولوژیکی است: در منظره دریایی استواری غالباً شنی غیریکپارچه و بستر سخت طبیعی محدود، این رسوبات توربی باقیمانده اکنون ساختار یکپارچه، سطح اتصال، پناهگاه، زیستگاه پرورشگاهی و مکانهای تغذیه برای فاونای دریایی فراهم میکنند. بنابراین، اهمیت این صخرههای توربی نه صرفاً در حضور تورب غرقشده، بلکه در میزان که یک بستر کربن خشکی باستانی به طور عملکردی به زیستگاه مدرن شبیه صخره بازآرایی شده که تنوع زیستی و توابع اکوسیستمی قابل مقایسه با سیستمهای صخره مرجانی کمعمق نزدیک را حمایت میکند. با شتاب صعودی سطح دریا و فرسایش خطوط ساحلی، ما احتمالاً نمونههای بیشتری از اکوسیستمهای خشکی در حال گذار به زیستگاههای دریایی جدید خواهیم دید. این سیستمهای گذار، که ممکن است شامل صخرههای توربی غرقشده، جنگلهای غرقشده یا بانکهای توربی حرا باقیمانده اکنون مورد سکونت حیات دریایی باشند، عمدتاً در پژوهش و مدیریت نادیده گرفته شدهاند. گنجاندن چنین زیستگاههای «رمز» در برنامهریزی تابآوری ساحلی مهم است، زیرا آنها میتوانند حفاظت ساحلی را افزایش دهند و زیستگاه جایگزین برای گونههای جابهجاشده توسط از دست دادن یا تخریب صخرههای مرجانی سنتی فراهم کنند. مشارکت آنها در تنوع زیستی، زیستگاه شیلات، عملکرد پرورشگاهی/پناهگاه، چرخه مواد مغذی و پتانسیل حفظ کربن میراث باید در استراتژیهای مدیریت و حفاظت ساحلی شناخته شود. برای مثال، طرحهای منطقه ساحلی در موزامبیک و فراتر میتوانند بیرونزدگیهای توربی را فهرستبندی و آنها را به عنوان ویژگیهای اکولوژیکی مهم گنجانده شوند، به ویژه در مناطقی که سلامت صخره مرجانی در حال کاهش است.
این مطالعه تا جایی که ما میدانیم، نخستین مشخصهسازی اکولوژیکی زیستگاههای صخره توربی دریایی استواری را نشان میدهد. تازگی این سیستمها به این معناست که آنها احتمالاً کمتر گزارش شده و کمتر ارزشگذاری شدهاند. زیستگاههای مشابه ممکن است در سایر مناطق استواری با باتلاقهای توربی ساحلی گسترده، شامل جنوب شرق آسیا، کارائیب و غرب آفریقا وجود داشته باشند، اما آنها در ادبیات علمی مستند نشدهاند. با نشان دادن اینکه صخرههای توربی استواری شبکههای غذایی پیچیده را حمایت میکنند و توابعی قابل مقایسه با زیستگاههای کمعمق کلاسیک (صخرههای مرجانی، بسترهای چمن دریایی و غیره) ایفا میکنند، ما خلئی در درک اکوسیستم خود را برجسته میکنیم. پژوهشهای آینده باید توزیع صخرههای توربی یا بانکهای توربی غرقشده، فرآیندهای تشکیل آنها و مسیرهای اکولوژیکی آنها تحت تغییر محیطی را بررسی کنند. اولویت نیز باید به کمّیسازی ضخامت تورب، چگالی توده، ذخایر کربن مساحتی، نرخهای دفن یا فرسایش کربن و شارهای گاز گلخانهای داده شود، که برای حل اینکه آیا این سیستمها عمدتاً به عنوان ذخایر کربن میراث عمل میکنند، آیا جوامع بستر و چمن دریایی زنده مرتبط به دفن مواد آلی معاصر کمک میکنند، یا اینکه آیا این فرآیندها در پازل ساحلی گستردهتر تعامل میکنند، ضروری است. پرداختن به این سؤالات ظرفیت ما را برای پیشبینی تغییرات اکوسیستم ساحلی و بهرهبرداری از مکانیزمهای تابآوری طبیعی بهبود خواهد بخشید.
در نتیجه، صخرههای توربی استواری در مجمعالجزایر بازوتو اکوسیستمی متولد از تحول را نمونهسازی میکنند، تلفیقی از مواد آلی باستانی و حیات دریایی مدرن. آنها از صخرههای مرجانی سخت در ترکیب ساختاری و ترکیب جامعه متفاوت هستند، اما به عنوان اجزای جزء منظره دریایی ساحلی عمل میکنند و پناهگاه، زیستگاه پرورشگاهی و مکانهای تغذیه برای طیف متنوعی از گونهها ارائه میدهند. ماهیت پویا و لکهای آنها ممکن است درجهای از تابآوری را از طریق تجدید مداوم و ارتباط با زیستگاههای مجاور اعطا کند. از دیدگاه گستردهتر، صخرههای توربی به ما یادآوری میکنند که با گرم شدن اقلیم و بالا آمدن دریاها، اکوسیستمها نه تنها خسارات را خواهند دید بلکه ممکن است از طریق توالی طبیعی به پیکربندیهای جدید مرتبط اکولوژیکی بازآرایی شوند، به ویژه جایی که بسترهای خشکی باقیمانده ساختار نادر در مناظر دریایی رسوب نرم دیگر فراهم میکنند. شناخت و مطالعه این سیستمهای جدید برای حفاظت ساحلی جامع، سازگاری با تغییر اقلیم و حفظ تنوع زیستی، ذخایر کربن میراث ساحلی و پازلهای زیستگاهی نادیدهگرفتهشده در آنتروپوسن حیاتی خواهد بود.
سایت مطالعه و زمینه
کار در سال 2023 به عنوان زیرپروژه تحت پلتفرم رصدخانه اقیانوس BCSS (مجوز MCTES 002/IICDTI/BCSS/MCTES/2023، مجوز INAMAR 1437/INAMAR/MA/2021; https://bcssmz.org/, https://bcssmz.org/ocean-observatory-public-database/) انجام شد، که دادههای سری زمانی دسترسی آزاد در منطقه انحصاری اقتصادی موزامبیک (EEZ) و کانال موزامبیک/مجمعالجزایر بازوتو ارائه میدهد. تمام بررسیهای میدانی در طرف جنوبی شبهجزیره سن سباستین، در منطقه بزرگتر مجمعالجزایر بازوتو، خارج از مناطق حفاظتشده دریایی (MPAs) انجام شدند (شکل 1). مجمعالجزایر بازوتو شامل صخرههای مرجانی حاشیهای و عمیق، بانکهای شنی و صخرههای توربی زیرآبی غنی از کربن با مرتبط بودن کربن آبی است که در امتداد خط ساحلی پویا شکلگرفته توسط تغییر سطح دریا هولوسن و عقبنشینی خط ساحلی قرار دارند. حفظ طولانیمدت و بازسازیهای مفهومی (شکل 1) نشان میدهند که تشکیل و دفن صخره توربی در طول زمان توسط فرسایش و مواجهه تحت افزایش سطح دریا دنبال شد. این منظره پازلی از تعاملات جنگل، خط ساحلی و صخره مرجانی-توربی را حمایت میکند، با شواهد همپوشانی زیستگاه، تبادل گونه و تغییرات فرسایشی افراطی هدایتشده توسط چرخندههای سالانه (شکل 2).
نمونهبرداری و مغزهگیری صخرههای توربی
هدف جمعآوری مواد لایه بالایی و مغزه دستیابی به محدودیتهای عمودی منفرد بر تاریخچه تشکیل رسوبات توربی بود، شامل اینکه آیا لایههای توربی بالایی، میانی و عمیقتر در سن رادیوکربنی و ترکیب ژئوشیمیایی متفاوت بودند. نمونههای توربی سطحی، زیرسطحی و مغزه از سه صخره توربی زیرآبی جمعآوری شدند. هر صخره شبکهبندی شد (10 × 10 m)، و بین 5 تا 10 نمونه سطحی یا زیرسطحی کمعمق با استفاده از گرپهای تصادفیسازیشده 20 cm² برداشته شدند. جایی که تورب یکپارچه نفوذ را اجازه میداد، نمونههای مغزه اضافی با استفاده از مغزهگیر توخالی فولاد ضدزنگ (قطر 5 cm) که به صورت دستی توسط غواصان SCUBA در بستر توربی رانده میشد، جمعآوری شدند. زیرا بستر صخره توربی سخت، نامنظم و لکهای بود، مغزههای رسوبی پیوسته با وضوح بالا به طور سازگار قابل بازیابی نبودند. در عوض، مواد بازیابیشده به عنوان نمونههای توربی منفرد یا زیرنمونههای مغزه درمان شدند. مجموعاً نمونههای/زیرنمونههای توربی (n = 22) برای تاریخگذاری رادیوکربنی ارسال شدند. این تاریخها به عنوان محدودیتهای سن نقطهای منفرد در سراسر سیستم صخره توربی تفسیر میشوند نه پروفایلهای پیوسته سن-عمق. زیرنمونهها پس از ورود به مرکز مطالعات علمی بازوتو (BCSS) در جزیره بنگورا، با استفاده از کوره Cole-Parmer StableTemp با جریان لامینار در 60 °C برای 48 ساعت خشک شدند. برای مواد توربی سطحی، گرپهای تکراری از همان واحد نمونهبرداری در صورت مناسب بودن تجمیع شدند، به صورت دستی همگن شدند و زیرنمونهای نماینده برای تحلیل ژئوشیمیایی و ایزوتوپ پایدار نگهداری شد. مواد مغزه پس از بازیابی به بازههای 1 سانتیمتری ضخامت بریده شدند و مواد نماینده از نقطه میانی برشهای انتخابی برداشته شد؛ بنابراین عمق ترسیمشده در شکل 3B نقطه میانی هر برش 1 سانتیمتری را نشان میدهد. نمونههای خشکشده سپس به دانشگاه لا کورونیا (اسپانیا) برای تحلیلهای ایزوتوپ پایدار و به مرکز باستانشناسی کورت-انگلهورن gGmbH (آلمان) برای تعیین سن رادیوکربنی (14C) ارسال شدند.
تحلیلهای ایزوتوپ پایدار
محتوای کربن و نیتروژن، همراه با مقادیر ایزوتوپ پایدار d¹⁵N و d¹³C، از مواد توربی خشکشده و همگنشده با استفاده از احتراق تحلیلگر عنصری جفتشده با طیفسنجی جرم نسبت ایزوتوپ تعیین شدند، و مقادیر C و N به عنوان درصد وزن خشک گزارش میشوند. این اندازهگیریها فقط برای مشخص کردن ترکیب و منشأ مواد توربی نمونهبرداریشده استفاده شدند؛ آنها برای کمّیسازی ذخایر کربن آلی رسوبی در سراسر زیستگاه صخره توربی گستردهتر استفاده نشدند. تحلیلها در دانشگاه لا کورونیا (اسپانیا) با احتراق با استفاده از تحلیلگر عنصری FlashEA1112 (ThermoFinnigan) جفتشده از طریق رابط Conflo IV به طیفسنج جرم نسبت ایزوتوپ DeltaV Advantage (Thermo Scientific) انجام شدند. نمونهها با استفاده از ترازوی میکرو UMX-2 (Mettler Toledo) در کپسولهای قلعی وزن شدند. نتایج برای d¹⁵N و d¹³C به ترتیب در ‰ نسبت به نیتروژن اتمسفری (Air) و Belemnite Vienna Pee Dee (VPDB) بیان میشوند. برای هر توالی تحلیلی، استانداردهای ثانویه زیر برای کالیبراسیون d¹⁵N استفاده شدند: USGS 40 (−4.52‰)، USGS 41a (+ 47.55‰)، IAEA-N-1 (+ 0.4‰)، IAEA-N-2 (+ 20.3‰) و USGS 25 (−30.4‰). برای d¹³C، استانداردهای استفادهشده عبارت بودند از: USGS 40 (−26.39‰)، USGS 41a (+ 36.55‰)، NBS 22 (−30.031‰) و USGS 24 (−16.049‰). دقت تحلیلی (انحراف استاندارد) با استفاده از استانیلاید به عنوان استاندارد آزمایشگاهی ارزیابی شد و ± 0.15‰ (n = 10) حاصل شد.
تعیین سن
تاریخگذاری رادیوکربنی بر نمونههای/زیرنمونههای توربی منفرد انتخابشده از مواد سطحی، زیرسطحی کمعمق و مغزه بازیابیشده انجام شد (شکل 3B). یک تعیین رادیوکربنی برای هر نمونه/زیرنمونه انتخابشده به دست آمد؛ بنابراین تاریخهای حاصل محدودیتهای سن نقطهای در سراسر سیستم صخره توربی را فراهم میکنند نه کرونولوژیهای پیوسته مغزه. تحلیلهای سن نمونهها در مرکز باستانشناسی کورت-انگلهورن gGmbH (آلمان) انجام شدند. نمونهها با استفاده از روش ABA (اسید/باز/اسید، HCl/NaOH/HCl) پیشدرمان شدند. بخش نامحلول برای درمان بیشتر استفاده شد. مواد نمونه باقیمانده در تحلیلگر عنصری (EA) به CO2 سوزانده شد. CO2 سپس به صورت کاتالیتیک به گرافیت تبدیل شد. 14C با استفاده از سیستم AMS نوع MICADAS داخلی تحلیل شد. نسبتهای ایزوتوپی 14C/12C و 13C/12C نمونهها، استاندارد کالیبراسیون (اسید اگزالیك-II)، بلانکها و استانداردهای کنترل به طور همزمان در AMS اندازهگیری شدند. سنین 14C به d13C = −25‰ نرمالسازی و با استفاده از مجموعه داده IntCal20 و نرمافزار SwissCal (L.Wacker، ETH-Zürich) کالیبره شدند. نمودارهای کالیبراسیون (شکل S1) با استفاده از نرمافزار OxCal تولید شدند (انحرافات کوچک بین نتایج SwissCal و OxCal ممکن است). سنین 14C در BP (قبل از حال حاضر) داده شدند به معنای سالهای قبل از 1950 میلادی. برای ارائه تاریخهای تقویمی مطلق، سنین 14C نیاز به کالیبراسیون داشتند. نتایج کالیبراسیون با استفاده از احتمال 68٪ (1s) و احتمال 95٪ (2s) سنین 14C به ترتیب نشان داده میشوند. مقدار d13C از تعیین ایزوتوپ در سیستم AMS با عدم قطعیت معمول 2‰ به دست آمد. این مقدار ممکن است تحت تأثیر تفکیک ایزوتوپی در منبع یون و در طول گرافیتیزاسیون باشد و فقط برای تصحیح تفکیک استفاده میشود. بنابراین، این مقدار با آن به دست آمده در IRMS ایزوتوپ پایدار قابل مقایسه نیست و نباید برای تفسیر داده بیشتر استفاده شود.
بررسیهای صخره مرجانی و توربی
بررسیهای اکولوژیکی از طریق غواصی scuba در سراسر سایتهای صخره مرجانی و توربی برای ارزیابی ساختار بستر و جوامع فاونا انجام شدند. پروتکلهای استاندارد در سراسر تمام سایتها اعمال شدند تا قابلیت مقایسه نتایج تضمین شود. روشهای بررسی شامل چهارگوشههای بستر برای مشخصهسازی زیستگاه، ترانسکتهای خطی بیمهرگان، شمارش ماهیان کوچک و شمارش مگافونا مطابق با روشهای استاندارد در رصدخانه اقیانوس BCSS (https://doi.org/10.82174/bcssmz.ocean.observatory.research.themes.methodology, https://doi.org/10.82174/bcssmz.ocean.observatory.timeseries.underwater.activity.survey.megafauna) بودند. هر بررسی یک جزء متمایز از جامعه صخره را هدف قرار داد و تحت شرایط نور روز و جزر و مد قابل مقایسه انجام شد. جمعآوری دادهها توسط نوع زیستگاه طبقهبندی شد تا مقایسههای مستقیم ساختار مجموعه، گروههای عملکردی و حضور گونه در سراسر سیستمهای صخره متضاد امکانپذیر شود. پروتکلهای دقیق برای هر جزء بررسی در زیربخشهای بعدی ارائه شده است.
چهارگوشهها
زیرا تحلیل فقط بر ساختار زیستگاه، مرجانهای نرم و سخت و انواع بستر تمرکز داشت، سایر ارگانیسمها مانند اسفنجها و آسکیدیاسه ثبت نشدند و بر اساس بستر که بر روی آن قرار داشتند برچسبگذاری شدند. خط ترانسکت 30 m در سراسر هر زیستگاه کشیده شد و هر 5 m، دو چهارگوشه عکسبرداری شدند، یکی در هر طرف خط ترانسکت (صخره مرجانی: 100 × 100 cm؛ صخره توربی: 50 × 50 cm). در آزمایشگاه، تمام چهارگوشههای عکسبرداریشده به صورت فردی مرور شدند تا درک اولیهای از تنوع گونهای در هر دو صخره مرجانی و توربی به دست آید. لیست جامعی از خانواده/گونه و گروههای عملکردی با استفاده از راهنماهای میدانی محلی تدوین شد. مرجانها تا سطح خانواده شناسایی شدند، با تمایز مرجانهای نرم و سخت. انواع بستر به عنوان مرجان مرده، سنگ، شن، تورب، صدف مرده و نخاله (تعریفشده به عنوان قطعات شل بزرگتر از 2 cm)، عمدتاً متشکل از سنگها و قطعات مرجانی دستهبندی شدند. هر چهارگوشه با استفاده از نرمافزار PhotoQuad تحلیل شد، با تولید نقطه یکنواخت در چگالی یک نقطه در cm² (صخره مرجانی: 100 نقطه؛ صخره توربی: 50 نقطه). هر نقطه به صورت سیستماتیک بر اساس کتابخانه گونه و بستر تثبیتشده برچسبگذاری شد. نمونهبرداری یکنواخت به جای روشهای تصادفی یا طبقهبندیشده برای اطمینان از احتمال انتخاب برابر در سراسر تمام نقاط استفاده شد. اقدامات کنترل کیفیت برای اطمینان از دقت و قابلیت اعتماد دادهها استفاده شدند، شامل دوبارهچک کردن برچسبها و اصلاح خطاهای شناساییشده.
بیمهرگان
شمارش بیمهرگان در امتداد ترانسکتهای نوار 30 m کشیدهشده در سراسر هر زیستگاه صخره انجام شدند. تمام بیمهرگان قابل مشاهده در لوحهای زیرآبی در عرض 2 m در هر طرف خط ترانسکت ثبت شدند که منجر به کل مساحت بررسی 120 m² در هر ترانسکت شد. بررسیها توسط دو ناظر (غواصی scuba) شنا در موازی، هر کدام پوشش یک طرف ترانسکت انجام شدند. سایتهای صخره مرجانی در پنج نوبت جداگانه بررسی شدند، با شمارشهای هر دو ناظر برای هر تاریخ تجمیع شدند. برای صخرههای توربی، یک بررسی در هر صخره انجام شد، با تجمیع شمارشهای هر دو ناظر. تمام بیمهرگان encounterشده تا سطح جنس و گونه (در صورت امکان) در محل یا از طریق تأیید عکسبرداری در صورت نیاز شناسایی شدند.
ماهیان کوچک
ماهیان کوچک (ماهیان استخوانی < 20 cm طول کل) با استفاده از روش سرشماری بصری ثابت سازگار برای زیستگاههای زیرآبی بررسی شدند. دو ناظر خود را در فواصل 4 m در امتداد خط ترانسکت 8 m کشیدهشده عمود بر زیستگاه صخره، شروع از نقطه مرکزی قرار دادند. هر بررسی شامل دو دوره مشاهده متوالی 5 دقیقهای بود. در طول 5 دقیقه اول، ناظران به آرامی در جای خود چرخیدند و تمام گونههای ماهی مشاهدهشده را در لوحهای زیرآبی ثبت کردند. در 5 دقیقه دوم، ناظران مجدداً به آرامی چرخیدند، تعداد افراد در هر گونه را شمردند و محدوده اندازه آنها را تخمین زدند. پس از تکمیل هر ترانسکت، خط بررسی 90 درجه در جهت ساعتگرد از جهت قبلی چرخانده شد و رویه تکرار شد. مجموعاً چهار ترانسکت چرخشی چنین در هر مکان بررسی انجام شدند و اجازه پخش فضایی گسترده در اطراف سایت نظارت ثابت را دادند.
مگافونا
مگافونای دریایی (هر حیوان شامل ماهیان استخوانی > 20 cm طول کل) در صخرههای مرجانی و توربی از طریق ترانسکتهای غواصی scuba بصری هدفگیری 46 گونه از پیش تعیینشده نمایانگر شاخصهای کلیدی سلامت اکوسیستم استفادهشده در بررسیهای غواصی رصدخانه اقیانوس BCSS (https://doi.org/10.82174/bcssmz.ocean.observatory.timeseries.underwater.activity.survey.megafauna) بررسی شدند. هر بررسی ترانسکت ثابت 30 دقیقهای را دنبال کرد، شروع از نقطه استاندارد (عرض/طول جغرافیایی ایستگاه) و پیشروی در خط مستقیم موازی با خط ساحلی، جهت شمال. دو غواص در موازی شنا کردند، حفظ فاصله 5 m از یکدیگر، و تمام گونههای هدف مشاهدهشده در محدوده بصری خود (طرف چپ/راست) را با استفاده از لوحهای زیرآبی ثبت کردند.
سری زمانی آب دریا و نمونهبرداری منفرد صخرههای مرجانی و توربی
شرایط محیطی در صخرههای مرجانی و توربی با استفاده از مهارهای ثابت مجهز به حسگرهای HOBO Pendant® برنامهریزیشده در فاصلههای 1 دقیقهای و 15 دقیقهای پایش شدند. استقرارها بین 5 تا 15 روز طول کشیدند و نوسانات کوتاهمدت دمای بستر و نور را ثبت کردند. حسگرها شامل مدلهای ONSET HOBO Pendant® UA-002-64 و/یا MX2202 بودند. UA-002-64 از ترمیستور دقیق برای اندازهگیری دما از − 20 °C تا 70 °C (دقت ± 0.53 °C در 25 °C؛ وضوح 0.14 °C) و دیود نوری سیلیکونی برای تشخیص شدت نور نسبی (کالیبرهنشده به لوکس)، مناسب برای ردیابی چرخههای نور/تاریکی روزانه استفاده میکند. اندازهگیریهای منفرد مکمل دما (−5 تا 70 °C؛ وضوح 0.1 °C؛ دقت ± 0.2 °C)، شوری (0 تا 70 ppt؛ وضوح 0.01 ppt؛ دقت ± 0.1 ppt)، اکسیژن حلشده (0 تا 50 mg L−1؛ وضوح 0.1٪ اشباع هوا؛ دقت ± 2٪) و pHtotal (0 تا 14 واحد، 0.01 واحد، ± 0.2 واحد) در اطراف مناطق صخره مرجانی و توربی با استفاده از کاوشگر چندپارامتری ProQuatro YSI، کالیبرهشده هر سه ماه جمعآوری شدند.
نرمافزار و پردازش دادههای آماری/گرافیک
تمام تحلیلهای داده عمدتاً در R-Studio (v2022.02.3) انجام شدند، با آزمون آماری، تحلیل جامعه و بصریسازی انجامشده با استفاده از بستههای vegan، tidyverse و ggplot2. ماتریسهای ناسازگاری Bray-Curtis با استفاده از تابع vegdist() محاسبه شدند و تفاوتهای چندمتغیره بین انواع صخره با استفاده از توابع ANOSIM، SIMPER و PERMANOVA در بسته vegan ارزیابی شدند. درختنمودارها، ترتیبدهیهای تحلیل مختصات اصلی (PCoA) و نقشههای حرارتی به ترتیب با استفاده از ggplot2، factoextra و pheatmap تولید شدند. نمودارهای ون با استفاده از VennDiagram ایجاد شدند و مقیاسبندی رنگ با RColorBrewer تنظیم شد. پردازش داده اکتشافی و نمونهسازی اولیه شکل در Python (v3.8) با استفاده از pandas، seaborn و matplotlib حمایت شد و اعتبارسنجی ماتریس انتخابی و رسم نمودار مقایسهای در MATLAB R2020b انجام شد. تمام شکلهای نهایی در Adobe Illustrator CS6 مونتاژ و استانداردسازی برای انتشار شدند. قبل از تحلیل، تمام مجموعه دادهها برای کامل بودن غربالگری شدند، برای نرمال بودن و همگنی واریاسیون در صورت مرتبط بودن بررسی شدند و برای outliers با استفاده از تشخیصهای پلتفرم خاص بازرسی شدند.